Arabidopsis thaliana puede completar todo su ciclo de vida, desde la germinación hasta la producción de semillas maduras, en apenas seis semanas. Esta velocidad, poco común entre las plantas con flores, ha convertido a esta pequeña hierba en una de las herramientas más usadas de la biología vegetal moderna.
Conocida también como berro de ratón o arabidopsis, pertenece a la familia de la mostaza (Brassicaceae) y es originaria de Eurasia y África. Hoy crece de forma espontánea en cunetas, terrenos removidos y bordes de caminos de todo el mundo, donde suele considerarse una simple mala hierba. Su verdadero valor, sin embargo, no está en su papel ecológico sino en lo que ha permitido descubrir sobre el funcionamiento íntimo de las plantas.
Identificación y Apariencia
El rasgo más reconocible de Arabidopsis thaliana es su roseta basal de hojas pequeñas y vellosas, de la que emerge un tallo floral delgado y erguido. La planta alcanza normalmente entre 20 y 25 cm de altura y se comporta como anual, aunque en ocasiones puede ser bienal.
Las hojas basales miden entre 1,5 y 5 cm de largo y 2 a 10 mm de ancho, van del verde al ligeramente purpúreo y presentan un margen que varía de entero a burdamente dentado; las hojas del tallo son más pequeñas, sin peciolo y de margen generalmente entero. Todas están cubiertas de pequeños pelos unicelulares llamados tricomas, visibles a simple vista con algo de atención.
Las flores, de apenas 3 mm de diámetro, se agrupan en una inflorescencia en corimbo y muestran la estructura típica de las Brassicaceae. El fruto es una silicua de 5 a 20 mm de largo que contiene entre 20 y 30 semillas. Bajo tierra, una raíz primaria única crece en vertical y luego desarrolla raíces laterales más finas, que establecen asociaciones con bacterias del suelo como Bacillus megaterium.
Distribución y Hábitat
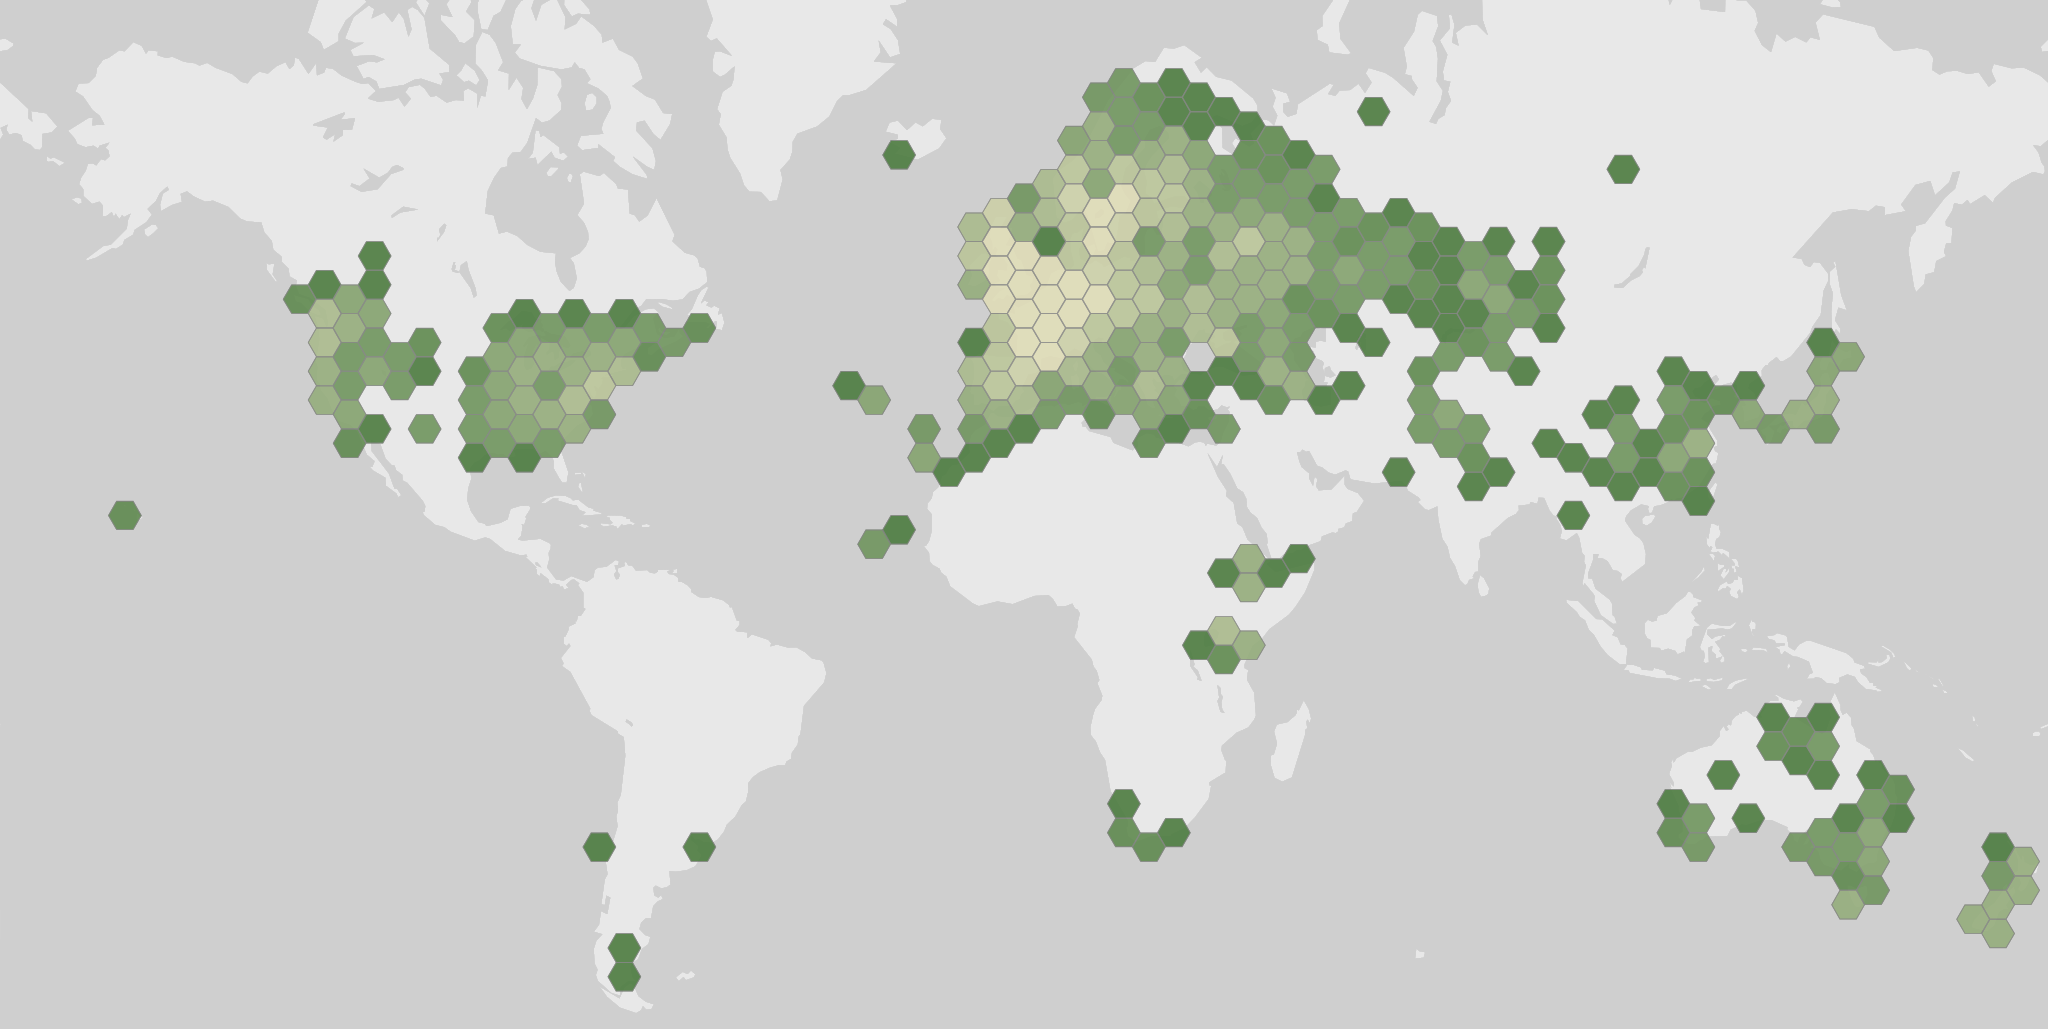
Arabidopsis thaliana es nativa de Europa, Asia y África, con una distribución bastante continua desde el Mediterráneo hasta Escandinavia y desde España hasta Grecia. También parece ser nativa de ecosistemas alpinos tropicales de África y posiblemente de Sudáfrica. Desde entonces se ha naturalizado en todo el mundo, incluyendo Norteamérica, donde llegó alrededor del siglo XVII.
La especie ocupa llanuras, laderas montañosas, orillas de ríos y bordes de caminos, desde el nivel del mar hasta los 2000 metros de altitud. Es una colonizadora frecuente de suelos rocosos, arenosos y calcáreos, y prospera en campos agrícolas, vías férreas y terrenos baldíos. Pese a su amplia distribución, su escasa capacidad competitiva y su tamaño reducido hacen que no se la considere una mala hierba nociva.
Los registros de observación muestran un patrón estacional marcado, con un máximo claro en abril y mayo y un descenso pronunciado durante los meses de otoño e invierno. Estos datos reflejan únicamente la presencia registrada de la planta y no deben interpretarse como una medida de su abundancia real ni del alcance completo de su área de distribución, pero sí sugieren que la primavera es la temporada en que resulta más visible y fácil de encontrar.
Crecimiento y Forma
Su historia como planta modelo se apoya en un rasgo clave: el tallo floral central aparece a las tres semanas de germinar, y toda la planta completa su desarrollo, desde la semilla hasta la producción de nuevas semillas, en torno a seis semanas. Este comportamiento de efímera de primavera, junto con su tamaño reducido y su capacidad de producir varios miles de semillas por individuo, permite cultivarla en espacios mínimos, en placas de Petri, macetas o sistemas hidropónicos, bajo luz fluorescente o en invernadero.
Gracias a esta rapidez, Arabidopsis thaliana se ha convertido en el organismo de referencia para entender cómo se desarrollan los órganos vegetales. El estudio de sus flores llevó a formular el modelo ABC del desarrollo floral, según el cual tres clases de genes (A, B y C) determinan la identidad de sépalos, pétalos, estambres y carpelos organizados en verticilos. Mutaciones homeóticas, como la mutación agamous, transforman estambres en pétalos y sustituyen los carpelos por flores repetidas en un patrón de sépalo-pétalo-pétalo.
De forma similar, el análisis de sus hojas, relativamente simples y estables, ha permitido describir el desarrollo foliar en tres etapas: la iniciación del primordio, el establecimiento de la dorsiventralidad y la formación de un meristemo marginal. La supresión de genes de la familia KNOX de clase I en el primordio libera la biosíntesis de giberelina y desencadena el crecimiento de la hoja. La translucidez de las plántulas jóvenes, especialmente de sus raíces, facilita además la observación en vivo mediante microscopía de fluorescencia y confocal.
Reproducción y Ciclo de Vida
Arabidopsis thaliana se reproduce predominantemente por autopolinización, con una tasa de cruzamiento con otros individuos estimada en menos del 0,3%. El mecanismo físico que lo hace posible es la autogamia previa a la antesis: la fecundación ocurre en gran medida antes de que la flor llegue a abrirse por completo.
El análisis del desequilibrio de ligamiento a escala genómica sugiere que esta estrategia de autofecundación evolucionó hace aproximadamente un millón de años o más. Aunque las meiosis que conducen a la autopolinización difícilmente generan variabilidad genética beneficiosa significativa, sí pueden aportar una ventaja adaptativa distinta: la reparación por recombinación del ADN dañado durante la formación de las células germinales en cada generación. Ese beneficio habría sido suficiente para mantener la meiosis a largo plazo incluso cuando va seguida de autofecundación.
Ecología y Relaciones
Arabidopsis thaliana prospera como planta pionera en suelos rocosos, arenosos y calcáreos, y coloniza con facilidad terrenos alterados como campos agrícolas, vías férreas y baldíos, donde su escasa capacidad competitiva le permite establecerse sin desplazar a otras especies.
Su papel más estudiado, sin embargo, es el que desempeña como modelo de las relaciones entre plantas y patógenos. La mayoría de los patógenos no logran infectarla gracias a la llamada resistencia de no-hospedador, un fenómeno que se ha investigado a fondo usando mutantes generados con el mutágeno metanosulfonato de etilo, identificando los genes PEN responsables de bloquear la penetración de hongos como Blumeria graminis, causante del mildiu polvoriento de las gramíneas.
Cuando un microbio entra en contacto con la planta, receptores de superficie como FLS2 y EFR detectan moléculas conservadas del patógeno, como la flagelina bacteriana o la proteína EF-Tu, y activan una primera línea de defensa conocida como inmunidad desencadenada por patrones. Una respuesta más específica, la inmunidad desencadenada por efectores, se activa cuando genes de resistencia de la planta reconocen directa o indirectamente las proteínas que el patógeno secreta para manipular a su huésped. Estos mecanismos, descubiertos en gran parte gracias a esta especie, han sido claves para entender cómo se defienden las plantas en general.
Curiosidades
- La especie debe su nombre a Johannes Thal, botánico alemán que la ilustró por primera vez bajo el nombre de Pilosella siliquata; en 1753 Carlos Linneo la describió como Arabis thaliana, y solo un siglo más tarde fue trasladada al género Arabidopsis.
- Los investigadores la transforman genéticamente con la bacteria Agrobacterium tumefaciens mediante un método llamado "floral dip", que consiste simplemente en sumergir los botones florales en una solución con la bacteria y un detergente, sin necesidad de recurrir al cultivo de tejidos.
- El nombre de la especie no tiene ninguna vinculación religiosa; su asociación es puramente científica, ligada a generaciones de investigadores que la valoran como herramienta de estudio de la naturaleza vegetal.
Ecología
Hábitat
- Montaña
- Agua dulce
- Pastizal
- Suelo alterado
Porte
- Herbácea