Sur les bas-côtés des routes, dans les terrains vagues et les sols perturbés d'Europe, d'Asie et d'Afrique, pousse une petite plante que l'on remarque à peine : Arabidopsis thaliana.
Cette espèce appartient à la famille des Brassicacées, au sein de l'ordre des Brassicales et de la classe des Magnoliopsées. Elle colonise aussi bien les plaines que les pentes montagneuses, les berges de rivières et les sols perturbés, et elle a été introduite puis naturalisée sur presque tous les continents, notamment en Amérique du Nord dès le XVIIe siècle. Sa faible capacité à concurrencer d'autres plantes en fait une mauvaise herbe discrète, sans caractère réellement invasif.
Derrière cette apparence banale de plante de trottoir se cache pourtant une histoire scientifique singulière, que les sections suivantes permettent de découvrir.
Identification et Apparence
Le trait le plus utile pour la reconnaître est la combinaison d'une rosette de feuilles basales couvertes de petits poils simples (trichomes) et de minuscules fleurs blanches à quatre pétales, groupées en corymbe au sommet d'une tige fine. La structure florale suit le schéma classique des Brassicacées.
Arabidopsis thaliana est une plante annuelle, plus rarement bisannuelle, atteignant généralement 20 à 25 cm de hauteur. Les feuilles basales mesurent de 1,5 à 5 cm de long sur 2 à 10 mm de large, tandis que les feuilles de la tige florale sont nettement plus petites et dépourvues de pétiole.
La couleur varie du vert au légèrement pourpré selon les feuilles basales, dont le bord peut être entier ou grossièrement denté ; les feuilles caulinaires, elles, ont presque toujours un bord entier. Le fruit est une silique allongée de 5 à 20 mm, contenant de 20 à 30 graines.
Sous terre, une racine principale unique descend verticalement avant de produire des racines latérales plus fines. Ces racines établissent des associations avec des bactéries de la rhizosphère, comme Bacillus megaterium, un détail qui distingue la plante au-delà de sa seule silhouette aérienne.
Distribution et Habitat
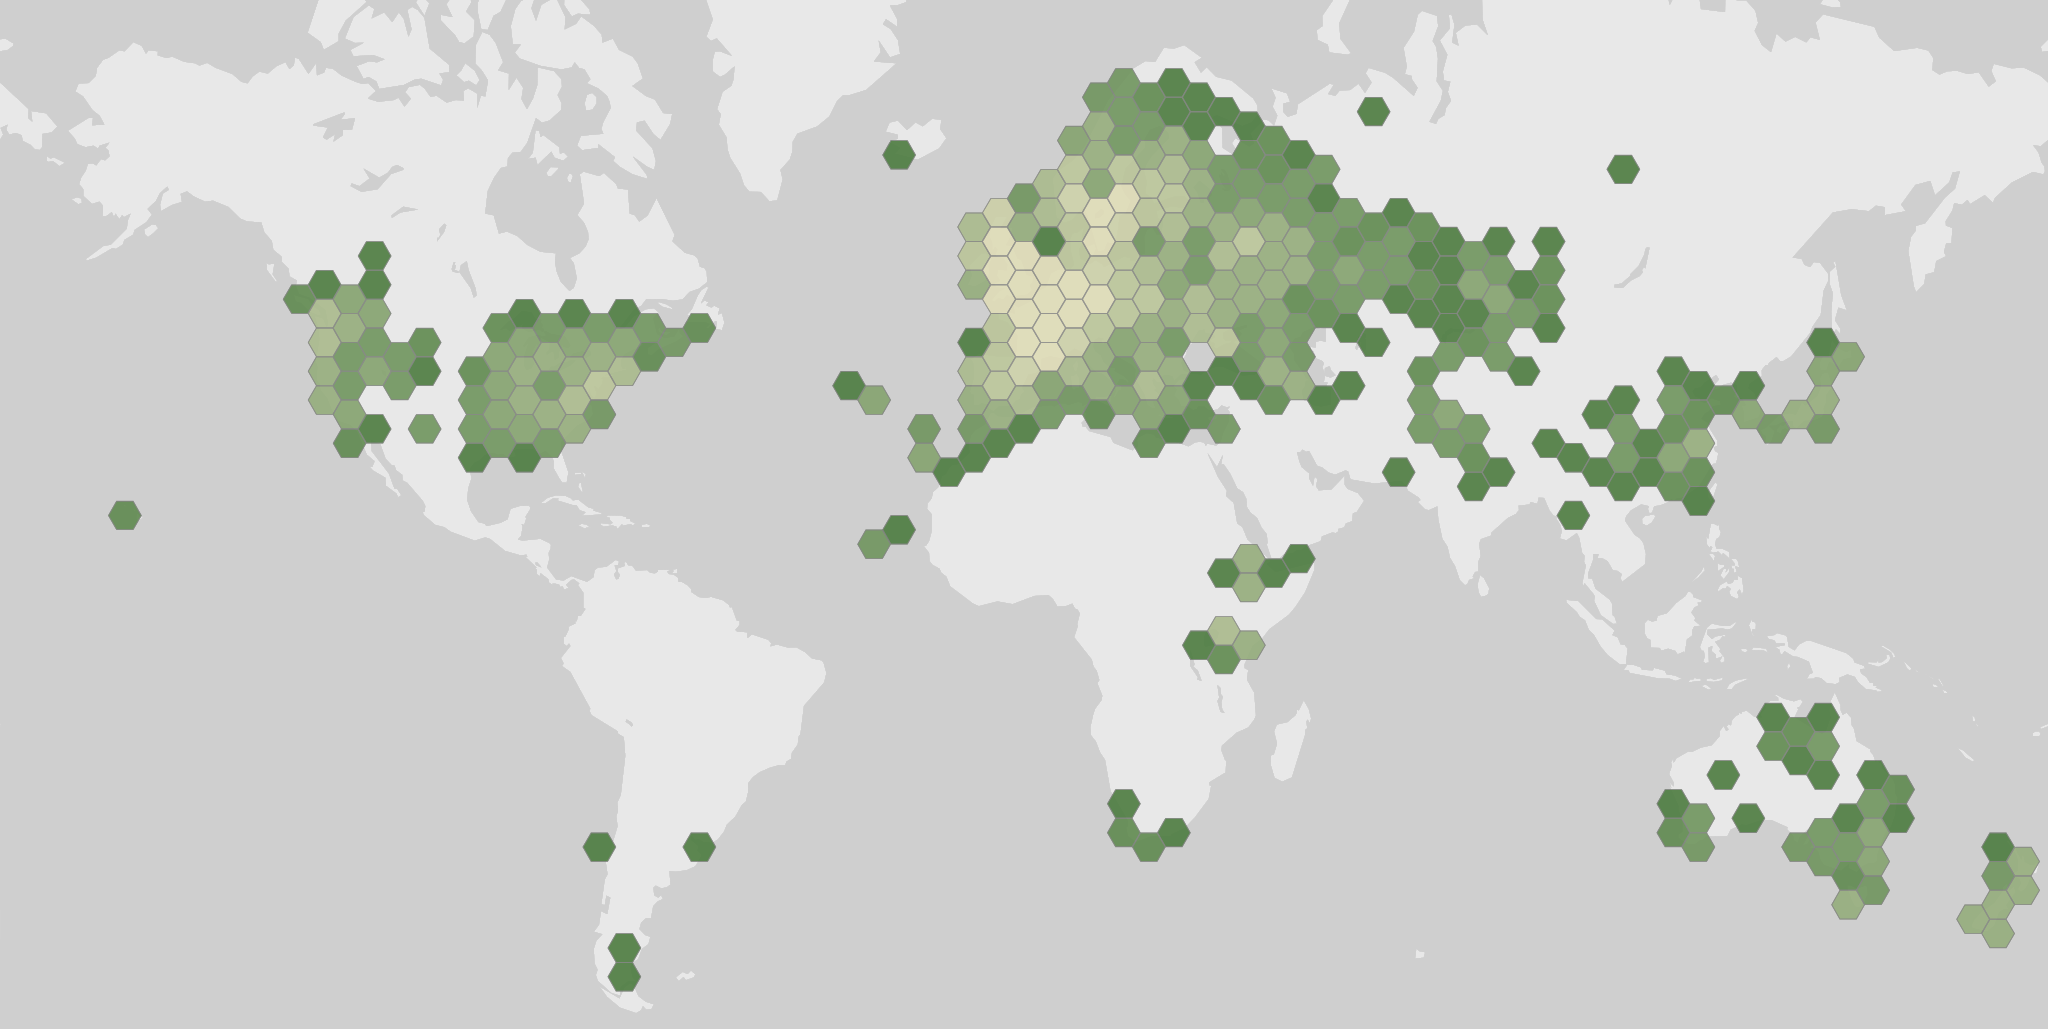
L'aire d'origine de Arabidopsis thaliana couvre l'Europe, l'Asie et l'Afrique, avec une répartition assez continue de la Méditerranée jusqu'à la Scandinavie, et de l'Espagne jusqu'à la Grèce. Elle semble également indigène dans certains écosystèmes alpins tropicaux d'Afrique, et peut-être en Afrique du Sud. Elle a depuis été introduite et naturalisée à travers le monde, notamment en Amérique du Nord dès le XVIIe siècle.
L'espèce affectionne les milieux ouverts et perturbés : plaines, pentes montagneuses, berges de rivières, bords de route, voies ferrées et terrains vagues, du niveau de la mer jusqu'à 2000 mètres d'altitude. Elle pionnière volontiers les sols rocheux, sableux ou calcaires, ce qui explique sa présence fréquente dans les champs cultivés sans qu'elle soit considérée comme une mauvaise herbe nuisible, sa petite taille et sa faible compétitivité limitant son impact.
Les comptages mensuels d'observations disponibles montrent un pic marqué entre avril et mai, avec des valeurs qui chutent fortement dès l'été et restent basses en automne et en hiver. Ces chiffres reflètent uniquement la fréquence des observations et non l'abondance réelle de la plante, mais ils concordent avec son cycle de vie de type éphémère printanier.
Comme beaucoup de Brassicacées, elle est comestible crue en salade ou cuite, bien que cet usage reste marginal et peu répandu.
Croissance et Port
Arabidopsis thaliana est une plante à cycle extrêmement court : de la germination à la production de graines mûres, certaines lignées de laboratoire ne demandent qu'environ six semaines. Ce comportement de plante éphémère printanière se traduit par l'apparition de la tige florale centrale environ trois semaines après la germination, suivie d'une autopollinisation naturelle et de la production de plusieurs milliers de graines par individu.
Cette croissance rapide et compacte a fait de l'espèce une référence pour étudier le développement floral. L'observation de mutations homéotiques, comme la mutation agamous qui transforme les étamines en pétales et remplace les carpelles par une nouvelle fleur répétée en spirale, a conduit à formuler le modèle ABC du développement floral : des gènes de classe A, B et C contrôlent respectivement l'identité des sépales et pétales, des pétales et étamines, puis des étamines et carpelles.
La plante a aussi permis de décortiquer la formation des feuilles en trois étapes : l'initiation du primordium foliaire par la suppression de gènes de la famille KNOX de classe I (ce qui augmente localement la gibbérelline), l'établissement d'une face supérieure et d'une face inférieure distinctes, puis la mise en place d'un méristème marginal. La petite taille et la transparence des jeunes plantules, en particulier de leurs racines, permettent une imagerie cellulaire en direct par microscopie à fluorescence ou confocale, sans fixation ni coupe.
Reproduction et Cycle de Vie
Arabidopsis thaliana est une plante essentiellement autogame : le taux de fécondation croisée est estimé à moins de 0,3 %. L'analyse du déséquilibre de liaison à l'échelle du génome suggère que cette autopollinisation s'est mise en place il y a environ un million d'années, voire plus.
Le mécanisme physique repose sur une autogamie pré-anthèse : la fécondation a lieu en grande partie avant même l'ouverture de la fleur. Une telle reproduction limite fortement la variabilité génétique issue de la méiose, mais celle-ci conserve un intérêt adaptatif en permettant la réparation par recombinaison des dommages de l'ADN lors de la formation des cellules germinales à chaque génération.
Ce bénéfice de réparation, indépendant de tout brassage génétique, pourrait expliquer pourquoi la méiose persiste durablement chez cette espèce malgré une autofécondation quasi systématique.
Écologie et Interactions
Arabidopsis thaliana occupe une place particulière en écologie végétale non pas par son rôle dans une chaîne alimentaire, mais comme modèle pour comprendre les interactions entre plantes et agents pathogènes (bactéries, champignons, oomycètes, virus, nématodes). La plupart des plantes résistent à la plupart des agents pathogènes grâce à une résistance non-hôte, un phénomène étudié chez cette espèce vis-à-vis de Blumeria graminis, l'agent de l'oïdium des graminées, via des mutants dits PEN plus sensibles à la pénétration du champignon.
Lorsqu'un agent pathogène ou un microbe est détecté, la plante déclenche une immunité dite déclenchée par les PAMP : des récepteurs de surface reconnaissent des motifs moléculaires conservés chez les microbes. Le récepteur FLS2 reconnaît ainsi la flagelline bactérienne, tandis qu'un second récepteur, EFR, reconnaît la protéine bactérienne EF-Tu ; ce dernier a même été transféré avec succès dans le tabac pour lui conférer cette capacité de reconnaissance.
Une réponse plus spécifique et plus puissante, l'immunité déclenchée par les effecteurs, repose sur la reconnaissance directe ou indirecte des protéines sécrétées par l'agent pathogène par des gènes de résistance de la plante. L'ensemble de ces mécanismes, disséqués en grande partie grâce à cette espèce, a profondément fait progresser la compréhension de la défense des plantes face aux maladies.
Le saviez-vous ?
- La transformation génétique de la plante se fait couramment par une méthode appelée « floral dip » : il suffit de tremper les boutons floraux dans une solution contenant la bactérie Agrobacterium tumefaciens et un détergent, sans passer par la culture de tissus.
- La toute première illustration connue de la plante, sous le nom de « Pilosella siliquata », figure dans un ouvrage attribué à Johannes Thal, qui a donné son nom à l'espèce.
- En 1753, Carl von Linné a repris cette illustration pour décrire la plante sous le nom d'Arabis thaliana, avant qu'elle ne soit transférée environ un siècle plus tard dans le genre Arabidopsis.
Écologie
Habitat
- Montagne
- Eau douce
- Prairie
- Sol perturbé
Port
- Herbacée